Welcome to Smart Agriculture 中文
Intelligent Management and Control

Dynamic Energy-Saving Supplementary Lighting Control Method for Protected Grapes Based on Optimal Photosynthetic Efficiency Point

  • JIN Meng 1, 2 ,
  • LI Hualong , 1 ,
  • LI Miao 1 ,
  • HE Jin 3 ,
  • LIU Xianwang 1 ,
  • MA Zhirun 1 ,
  • XIE Miaomiao 4 ,
  • CHENG Binbin 1, 3 ,
  • XUAN Lei 1, 3 ,
  • YE Fei 1, 3
Expand
  • 1. Institute of Intelligent Machines, Hefei Institutes of Physical Science, Chinese Academy of Sciences, Hefei 230031, China
  • 2. College of Information and Artificial Intelligence, Hefei University of Economics, Hefei 230036, China
  • 3. College of Information and Artificial Intelligence, Anhui Agricultural University, Hefei 230036, China
  • 4. School of Electronic and Information Engineering, Hefei Institute of Technology, Hefei 238076, China
LI Hualong, E-mail:

JIN Meng, E-mail:

Received date: 2026-03-08

  Online published: 2026-10-08

Supported by

The Anhui Provincial Key Research and Development Program(2023n06020027)

National Key Research and Development Program(2022YFD2002104)

2025 Anhui Province University Outstanding Young Teacher Cultivation Program(YQYB2025101)

Copyright

copyright©2026 by the authors

Abstract

[Objective] In protected grape cultivation, supplementary lighting can improve crop photosynthetic efficiency, regulate plant growth, and improve fruit yield and quality. However, most existing supplementary lighting studies focus on optimizing instantaneous photosynthetic rate or yield-related indicators through fixed or empirical lighting strategies, ignoring the complex trade-off between photosynthetic performance and energy consumption under variable greenhouse conditions. As energy costs rise and sustainable agriculture becomes more important, a dynamic energy-saving supplementary lighting control strategy for greenhouse Shine Muscat grapes based on the optimal photosynthetic efficiency point (OPEP) is proposed in this study, with plant physiological response modeling and multi-objective optimization integrated, to develop an intelligent, energy-saving lighting regulation system that balances crop physiological demands and energy conservation. [Methods] First, a thorough dataset was built by collecting crucial environmental and physiological factors at various stages of the grape veraison phase, such as temperature, photosynthetically active radiation (PAR), and leaf-level photosynthetic rate. The choice of the veraison period is especially crucial, since this stage signifies a key transitional stage in grape growth, when both the demand for carbon assimilation and the sensitivity to the environment are elevated. A modified rectangular hyperbola model was used to describe the nonlinear response relationship between PAR and photosynthetic rate, allowing for precise depiction of light saturation and the law of diminishing returns under high-irradiance conditions. In addition, a D-Sigmoid function was employed to simulate the temperature–photosynthetic rate response, depicting the asymmetric and threshold-dependent physiological characteristics of grape leaves under different thermal conditions. Based on these two sub-models, a light-temperature interaction model was built to reflect the joint effects of environmental factors on photosynthetic performance, enabling more realistic simulation of greenhouse microclimate changes. A multi-objective optimization system was then established with two conflicting aims: (1) maximizing the net photosynthetic rate to ensure adequate carbon assimilation for grapevine growth, and (2) minimizing the energy consumption of supplemental lighting to enhance energy efficiency and cut down operational expenses. To address this issue, the strength pareto evolutionary algorithm 2 (SPEA-2) was employed because of its strong ability to preserve solution variety and approach the Pareto-optimal front in intricate nonlinear search domains. The algorithm repeatedly produced a Pareto frontier that showed the trade-off between photosynthetic performance and energy consumption. Afterward, a sequential search algorithm was utilized to precisely determine the OPEP from the Pareto set. [Results and Discussions] Experiments were conducted under controlled greenhouse conditions to evaluate the efficacy of the proposed approach. The findings showed that, in the grape veraison stage, the suggested dynamic supplementary lighting approach notably enhanced energy utilization effectiveness when compared with traditional fixed-intensity lighting plans. In particular, the consumption of lighting energy was decreased by an average of 34.27%, whereas the decline in photosynthetic rate was restricted to merely 6.60%. This shows that the system effectively prevents excessive compromise of physiological performance when attaining considerable energy savings. A deeper examination of the temporal response curves indicated that the suggested method enabled dynamic adjustments to the lighting intensity based on environmental variations, avoiding needless energy consumption during times of light saturation or when temperature conditions were favorable. This adaptable behavior is especially advantageous in greenhouse settings where microclimatic circumstances can vary rapidly and non-linearly. Moreover, the Pareto frontier produced by SPEA-2 showed a smooth and evenly-spread trade-off surface, validating the robustness of the optimization framework. The recognized OPEP point was found to be situated close to the inflection area of the response curve, where marginal photosynthetic benefits start to decrease significantly in relation to energy input. This shows that the proposed method can approach the physiological efficiency limit of grape leaves when there is combined light and temperature control. [Conclusions] The proposed approach is able to cut down the energy consumption of supplementary lighting while maintaining a relatively high photosynthetic capacity for greenhouse-cultivated Shine Muscat grapes. By combining physiological response modeling with multi-objective evolutionary optimization, this method provides a systematic and interpretable framework for precise lighting control. It efficiently enhances the utilization rate of energy and attains an ideal equilibrium between production advantages and energy usage in protected horticultural systems. Furthermore, this framework may also be applicable to other high-value greenhouse crops and provides a general strategy for smart agricultural energy management under future climate and sustainability limitations. Future research could further integrate other environmental factors, such as humidity and CO2 concentration, and investigate real-time adaptive control tactics based on reinforcement learning to improve model responsiveness in dynamic greenhouse environments.

Cite this article

JIN Meng , LI Hualong , LI Miao , HE Jin , LIU Xianwang , MA Zhirun , XIE Miaomiao , CHENG Binbin , XUAN Lei , YE Fei . Dynamic Energy-Saving Supplementary Lighting Control Method for Protected Grapes Based on Optimal Photosynthetic Efficiency Point[J]. Smart Agriculture, 2026 , 8(5) : 293 -305 . DOI: 10.12133/j.smartag.SA202603010

0 引 言

葡萄含有维生素、矿物质、抗氧化物质等各类营养成分,在中国种植范围较广。安徽作为国内典型南方葡萄产区,葡萄园智能监测等人工智能应用需求突出[1]。人工智能、物联网等前沿技术不断迭代,开展设施环境改良工作时,可使用遗传算法等智能优化方法对设施内光环境进行优化规划,可提升自然采光效率、降低能源消耗;在设施农业智能管控环节,搭建环境监测与智能决策体系,可精准调控作物生长环境及全生产流程,提高设施农业的整体生产效率。针对补光阶段的能源消耗难题,研究人员借助智能调控方法设计自适应节能补光系统,结合作物实际生长需求动态调整光环境,提升光能利用效率[2-4],可为优化作物生长条件、提升设施作物的生产效率提供理论依据和技术思路。目前围绕设施葡萄光合速率的系统性研究相对不足,光温协同调控领域尤其缺乏定量模型作为支撑[5, 6];当前多数补光技术未考虑光照、温度共同作用对光合速率的非线性影响,多采用以光饱和点为参考的固定补光模式,会让能源浪费的情况出现[7]。如何减少补光环节的能耗、达到最优补光效果,是目前需要攻克的核心技术难题。
目前国内外专家针对设施作物光合速率及补光调控技术展开了相关研究。STIRBET等[8]提出的光合模型可全面且动态地刻画光合作用流程,还探讨了怎样通过优化诸如光照强度、温度等环境要素,提高植物的生物量与生产力,探寻外界环境因子对植物光合速率的作用及其内在原理。但研究核心倾向于理论机制以及模型构建,未触及温室补光系统里的动态节能调控问题,也缺乏对补光能耗和经济性的分析。JAYASURIYA等[9]运用立体视觉系统的相关技术,融合移动平台以及深度学习模型,对受保护设施里作物的高度予以估计,精准监测作物生长进程中的主要指标,但该类表型监测研究大多面向灌溉调控场景,关于温室补光设备的耗电特性与节能运行未展开讨论。MOSHARAFIAN等[10]针对温室LED补光期间能源消耗较大的问题,联合太阳辐射预测模型建立动态补光优化控制办法,通过预测自然光的变动实时调节补光强度,在实现作物光需求的同时减少补光能源的投入,为设施农业节能型光环境调控提供新的技术途径。但是此项研究主要将降低补光的电能消耗当作优化目标,针对作物光合响应进程以及单位能源投入所对应的光合收益缺少深入分析,很难实现作物生理需求和能源利用效率的协同优化。MAEDA等[11]全面分析温室番茄补光进程里LED光源的运用、补光策略,以及能源优化方面的问题,点明传统恒定光强的补光模式难以符合自然光的变动,以及作物动态的需光特性,很容易造成能源的浪费,未来设施补光应当结合植物的光响应特点开展精准调控。此研究为以作物需求为基础的动态补光方略提供理论支撑,不过主要专注于补光技术与能源管理领域的分析,还未进一步建立光合效率和补光能耗之间的定量优化关联。CHEN等[12]建立通过支持向量回归(Support Vector Regression, SVR)的光合速率预估模型,同时通过粒子群算法(Particle Swarm Optimization, PSO)对参数进行优化,实现对草莓光合速率的精准预估,为温室草莓光环境的分布式调节提供理论依据。但是其补光主要目的仍然是提高光合速率,并未深入分析补光过程里单位能耗对应的光合效益,存在能耗较高的问题。GAO等[13]运用SVR算法建立番茄光合速率的预测模型,选取光合速率曲线的转折点当作补光点,设计光环境控制的决策模型。此决策模型在光照降低60.49%的条件下,光合速率仅降低24.40%,光合速率降幅约为光照降幅的三分之一,尽管提高了番茄的生产效率,但仍存在光合速率损失较大的问题。徐立鸿等[14]针对蓝莓温室光温调控里的优化难题,采用非支配排序遗传算法(Non-dominated Sorting Genetic Algorithm II, NSGA-Ⅱ),给出光照与温度的协调优化手段。研究显示,在将种植效益置于优先考量的前提下,通过优化光照与温度配比,能够在降低能源消耗的同时提高光合速率,实现多目标协同。但这种方法需通过人工设定参数,无法根据不同环境实现自适应参数调整。
梳理现有设施补光相关研究发现光合效率与能耗协同优化仍存在短板,据此提出一种以光合最佳效能点(Optimal Photosynthetic Efficiency Point, OPEP)为核心的设施葡萄动态节能补光方法,用来处理当前普遍使用的光合饱和点固定值调控模式存在的能耗偏高、能源利用率偏低的问题,以实现设施葡萄补光过程中光合性能与补光能耗的协同优化目标,为设施葡萄精准节能补光调控工作提供理论依据与方法参考。

1 材料与方法

1.1 试验地点与材料

试验选址为安徽省合肥市农业科技园区(31°15′33.1″N,117°16′58.2″E),为亚热带湿润性季风气候,试验场地面积约为667 m2,试验用材料为5年生的“阳光玫瑰”葡萄丰产树,株行距4 m×6 m,栽培用拱形棚架H形半限根避雨方式,如图1所示。
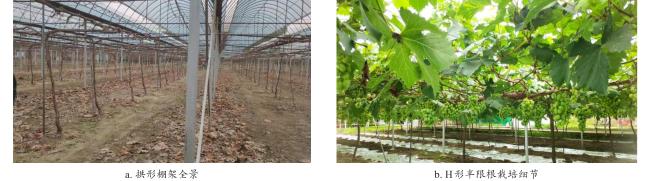
图1 “阳光玫瑰”葡萄棚

Fig. 1 "Shine Muscat" grape shed

1.2 数据收集

2024年7月1日到8月31日开展相关试验,借助CIRAS-3光合仪测定阳光玫瑰叶片的光合速率,测定时段定在葡萄的转色期,试验期间施肥、浇水等管理措施均严格遵循常规规范,且没有使用农药和激素,保证供试叶片在整个生长季的生长条件统一。转色期内安徽省的温度、光合有效辐射波动比较大,本次试验把转色期分成前期(7月1日—7月20日)、中期(7月21日—8月10日)和后期(8月11日—8月31日)这3个阶段,每个阶段内分别选取3天完成光合速率测定工作,具体日期为7月2日—4日、7月31日—8月2日和8月20日—22日。为避免正午时段强光、高温的干扰,保证测定数据符合植物的正常生理状态,选每天光照强度适中、气温相对平稳的9∶00~11∶00、15∶00~17∶00两个时段开展试验。
为获取不同光照条件下葡萄的光合速率,试验借助CIRAS-3光合仪叶片手柄内置的可调LED光源,设置了9组差异化的光合有效辐射梯度,具体包括200、400、600、800、1 000、1 200、1 400、1 600和1 800 μmol/m2/s,选取葡萄果穗对应节位处无其他叶片遮挡、正面朝上、大小相近的叶片开展测量。正式测量前,先用清水擦拭叶片,去掉表面浮灰,避免污垢遮挡气孔干扰测量结果,等叶片表面干透后,先让待测叶片在当前测量梯度下补光至少20分钟,让叶片适应当前光合有效辐射,等测量参数趋于稳定后再正式测量,提升光合速率测量的准确性。
试验每日分上午、下午两个时段,设9组不同光合有效辐射梯度,每组各采集50条数据,累计采集8 100条光合速率数据,即(50条×9组×2次/天×3天×3个试验时期)。每测一次光合速率,都用光合仪同步记录对应的环境温度,累计得到8 100条温度数据。筛选上午、下午的部分典型测定数据,整理后如表1所示。
表1 不同光合有效辐射梯度条件下转色期各阶段葡萄叶片光合速率实测数据

Table 1 Measurement data of grape leaf photosynthetic rate at different stages of the veraison period under different photosynthetically active radiation gradients

转色期 时间段 光合有效辐射/(μmol/m2/s) 温度/℃ 光合速率/(μmol(CO2)/m2/s)

转色

前期

上午 200 32.2 4.48
400 33.2 7.21
600 33.2 8.96
800 33.6 10.47
1 000 33.8 11.68
1 200 33.8 12.57
1 400 33.3 13.12
1 600 33.5 13.49
1 800 34.0 13.81
下午 200 36.3 4.12
400 36.3 6.68
600 36.5 8.31
800 36.7 9.62
1 000 36.8 10.58
1 200 36.6 11.19
1 400 36.4 11.54
1 600 36.5 11.73
1 800 36.2 11.81

转色

中期

上午 200 37.4 3.86
400 37.6 6.14
600 38.0 7.61
800 37.8 8.73
1 000 37.9 9.48
1 200 38.0 9.93
1 400 37.9 10.18
1 600 38.0 10.29
1 800 38.2 10.33
下午 200 40.0 3.21
400 40.1 5.08
600 39.7 6.31
800 39.9 7.16
1 000 39.8 7.71
1 200 39.7 8.03
1 400 39.5 8.19
1 600 39.6 8.24
1 800 39.6 8.27

转色

后期

上午 200 34.7 3.92
400 34.6 6.08
600 34.6 7.39
800 34.6 8.18
1 000 34.9 8.63
1 200 35.0 8.89
1 400 35.2 9.02
1 600 35.1 9.08
1 800 35.1 9.11
下午 200 37.5 3.34
400 37.5 5.18
600 37.4 6.37
800 37.4 7.08
1 000 37.4 7.49
1 200 37.1 7.71
1 400 37.0 7.82
1 600 37.1 7.86
1 800 37.0 7.88

2 光温交互模型构建

光温交互模型是用来表述光合有效辐射与温度的交互作用对植物生长、发育及光合作用等生理过程影响的模型[15-17],模型内加入了两类因子的交互作用项,可单独分析两个因子对植物的独立影响,也可分析两类因子在特定生长阶段或环境条件下的相互作用效果,综合考量光合有效辐射和温度这两类关键环境因子对植物生长速率、光合作用效率等的耦合作用[18]。
现有研究表明,植物光合有效辐射与温度之间存在比较明显的协同关系,会对植物光能利用效率产生比较大的影响[19-21]。结合该结论,本研究以植物光合有效辐射与温度两个关键环境因子为核心,开展光温耦合调控研究,搭建光温交互模型,理清这两类因子对葡萄光能利用效率及补光调控效果的影响。

2.1 光合有效辐射-光合速率响应曲线

已有研究结果显示,当光合有效辐射出现波动时,光合速率大多会呈现非线性的响应特征[22]。本研究选用直角双曲线修正模型,拟合光合有效辐射与光合速率的响应曲线[23],最终得到的拟合方程见公式(1):
P n ( I ) = α 1 - β I 1 + γ I I - R d    
式中:Pn (I)为葡萄与光合有效辐射相关的光合速率,μmol(CO2)/m2/s; α为光响应曲线的初始斜率; β和 γ是系数;I为总光合有效辐射,μmol/m2/s;Rd 为暗呼吸速率,μmol/m2/s。

2.2 温度-光合速率响应曲线

现有研究显示,温度超出适宜范围时,光合作用效率出现下降,温度与光合速率的关联通常不呈现线性特征,具体变化规律是温度逐步上升时,光合速率会先升高后降低,即在温度上升到某一最适温度后,光合作用速率会开始下降。低温区间内,温度逐步升高时,光合速率会逐步上升;高温区间内,温度继续升高则会让光合速率再次下降[24, 25]。
Sigmoid函数的曲线形态属于典型的反S形,能够准确反映温度与光合速率的变化趋势,已有学者使用Sigmoid函数刻画温度的变化规律[26]。但安徽地区葡萄的转色期处于七八月份,温度波动比较大,会对植物的光合作用速率产生直接影响。仅用单一Sigmoid函数很难准确还原植物光合作用的全部特征,温度变化剧烈的时段,植物可能出现不同的响应模式。本研究设计了双Sigmoid函数(D-Sigmoid),组合两条独立的Sigmoid曲线,在低温和高温两个区间内分别具备不同的适用性,可反映光合速率在这两个区间内的非线性变化特征。本设计的D-Sigmoid函数的具体表达为公式(2):
P n ( T ) = L 1 1 + e - k 1 T - T 0 - L 2 1 + e - k 2 T - T 1
式中:T为环境温度;℃, P n ( T )为与温度T有关的葡萄叶片光合速率值,μmol(CO2)/m2/s;相关参数L 1与L 2分别对应前后两个Logistic分量的幅值参量,可调节响应上升阶段与下降阶段的贡献占比;k 1与k 2分别对应所属阶段的速率参数或陡峭度参数,用于表示系统在阈值附近对T变动的敏感程度,这里k数值越高,过渡过程就越陡峭;相关参数T 0与T 1对应两个临界阈值位置,T 0对应响应进入明显激活状态的特征点位,T 1对应响应进入明显衰减状态的特征点位。

2.3 光温交互模型

本研究将公式(1)与公式(2)联立,构建得到的光温交互模型,如公式(3)所示,分析光合有效辐射与温度二者对光合速率的耦合作用,明确光合速率在不同光照和温度条件下的变化规律。
P n ( I , T ) = L 1 1 + e - k 1 ( T - T 0 ) - L 2 1 + e - k 2 ( T - T 1 ) α 1 - β I 1 + γ I I - R d
式中:Pn (I,T)代表光与温度共同作用时的光合速率。公式(1)的光合速率属于变量,数值由光合有效辐射决定;公式(2)的光合速率是另一类变量,数值受温度影响。本研究构建了光温交互的公式(3),让光合速率Pn (I,T)成为光合有效辐射与温度的函数,两个变量的影响都已被纳入其中。公式(3)依托D-Sigmoid函数建立温度与光合速率的非线性关联,再以该关联为基础,结合光合有效辐射与光合速率的对应关系,构建的光温交互模型。该模型可呈现光合有效辐射与温度对植物光合作用的共同作用,可用于分析植物生长与生态系统碳循环的相关规律。

3 光合效率与电能利用的协同优化

葡萄光合速率优化相关研究,核心目标是节能增效。围绕这一目标,本研究先依托已搭建完成的光温交互模型与补光系统电能消耗模型,搭建同时指向光合速率最大化、电能消耗最小化两个方向的多目标优化模型,再用第二代强度帕累托进化算法(Strength Pareto Evolutionary Algorithm 2, SPEA-2)完成模型的求解工作,得到光合速率与电能消耗对应的Pareto最优解集及匹配的帕累托前沿。依托上述结果,构建光合最佳效能集,用于反映不同环境条件下光合效率与能耗的最优权衡关系。后续考虑到实际环境参数呈连续变化状态,但Pareto解集本身呈离散分布的特征,提出步进搜索算法,在光合最佳效能集中筛选和当前环境状态匹配度最高的最优解,也就是OPEP,再将该解对应的补充光合有效辐射设为目标补光值,完成补光系统的动态优化调控。

3.1 SPEA-2多目标优化算法

SPEA-2属于依托群体运行的多目标优化算法,会在进化迭代过程中求取目标问题的帕累托前沿(Pareto Front)。该算法对传统Pareto排序方法做了优化,引入强度(Strength)和稀疏度(Density)调整解的多样性与分布状态,让最终解集的均匀度更高且具备代表性。和同类多目标优化算法做对比后发现,SPEA-2可在保障解集多样性的基础上,输出均匀度、精准度更高的Pareto前沿解,对应操作流程见图2。
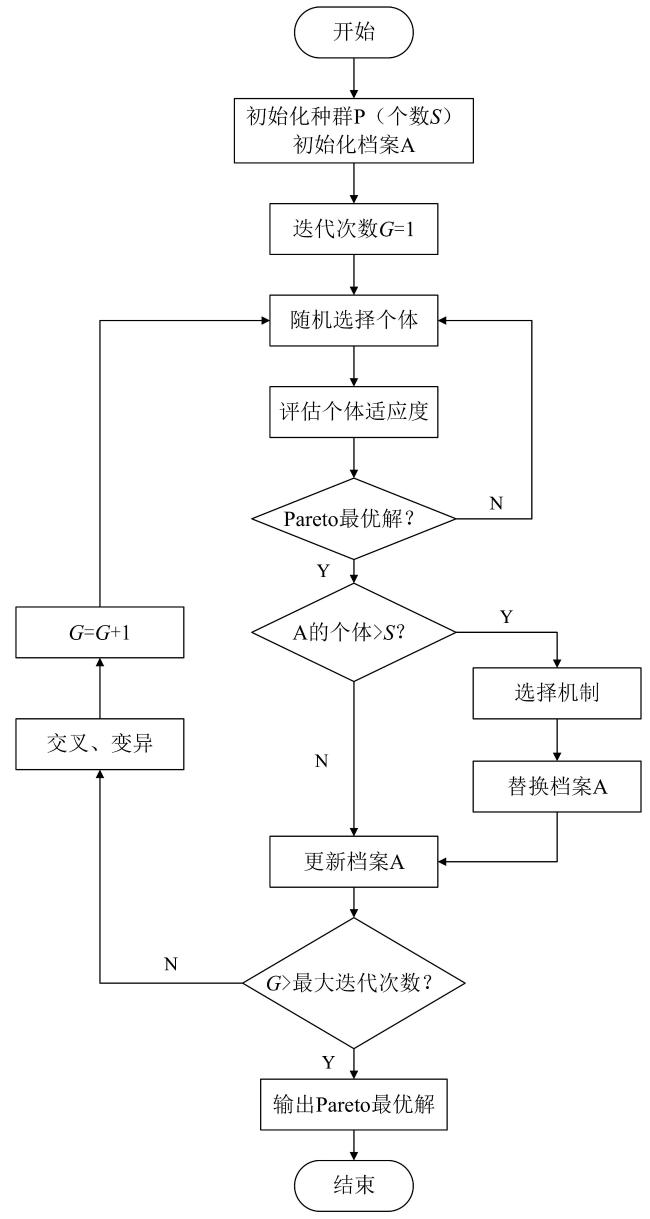
图2 SPEA-2流程图

Fig. 2 SPEA-2 flowchart

3.2 光合最佳效能集

求取OPEP的过程可归为多目标优化问题,对应解空间包含一组最优解,称作Pareto最优解集。把此Pareto最优解集定为光合最优效能集。

3.2.1 电能消耗量化模型

光合有效辐射是可定量反映某一特定区域光照强度情况的主要参数。光合有效辐射的物理含义是单位面积接收到的光能量通量。该指标属于标量,是对光源强度完成空间平均后得到的度量数值,不会涉及光照分布的具体空间布局,能够直接简捷地反映某一位置的整体光照效果。结合该标量的属性,系统总光合有效辐射可定义为自然光合有效辐射与补光灯光合有效辐射的线性叠加,如公式(4)所示。
I = I n a t u r e + I e x t r a
式中:I为总光合有效辐射,μmol/m2/s;I nature为自然光合有效辐射,μmol/m2/s;I extra为补光灯补加的光合有效辐射,μmol/m2/s。
基于此,电能消耗模型可表述为公式(5)。
E e l = 1 3.6 × 10 3 ∫ 0 t   Φ ( t ) e d t
式中:E el为补光灯消耗的电能,W∙h; Φ ( t )为时间点t对应的补光光通量(Photosynthetic Photon Flux, PPF),μmol/s;e为补光灯的光效,μmol/J;t为补光持续时长,s。这一模型可动态调整补光系统,优化光合有效辐射和补光时长,让光合速率与补光能耗达到最佳平衡。本次实验用的补光灯参数见表2所示。
表2 电能消耗模型中的补光灯参数表

Table 2 Parameters of fill light in the electrical energy consumption model

补光灯参数 数值
最大功率P max/W 780
最大光合光子通量 Φ /(μmol/s) 2 184
光效e/(μmol/J) 2.80

3.2.2 目标表达式与限制条件

参照实验补光灯参数,将光合速率最高、电能消耗最低设为目标,推导的目标表达式是公式(6)与公式(7):
m a x f 1 = m a x P n ( T , I n a t u r e , I e x t r a )  
m i n f 2 = m i n E e l ( I e x t r a , t )
补充的光合有效辐射需符合下述约束条件:数值要高于自然光合有效辐射(I extra >I nature),且最高不超过光饱和点(I sat)对应的光合有效辐射值(I extra <I sat -I nature)。电能消耗需控制在I extra运行所需的电能范围内,上述要求可确保补充光合有效辐射在合理区间内。据此,限制条件如下:
s . t . I m i n ⩽ I ⩽ I s a t T m i n ⩽ T ⩽ T m a x I n a t u r e - m i n ⩽ I n a t u r e ⩽ I n a t u r e - m a x 0 ⩽ I e x t r a ⩽ I s a t - I n a t u r e
其中,I为总光合有效辐射,μmol/m2/s;I min为植物开展有效光合作用的最低光照阈值,参照光温交互模型,本研究选100 μmol/m2/s;I sat为光饱和点对应的光合有效辐射,本研究选1 300 μmol/m2/s;T为环境温度,℃;Tmin 与Tmax 分别对应实验观测阶段的最低与最高温度。

4 步进搜索算法

以光合最佳效能集为依托,借助步进搜索算法开展匹配,可结合实时采集的环境温度与自然光合有效辐射数据,借助按帕累托前沿搭建的光合最佳效能集,在帕累托前沿解集中筛选出与当前环境参数匹配度最高的优化点,再将该点对应的补充光合有效辐射作为补光灯的调控基准值,即OPEP。
实时采集到的环境数据,会映射到由帕累托最优解构成的二维散点图中,欧氏距离作为相似度的度量指标。以当前的实时外界环境点为中心点,预先设定合理的搜索半径(R),如在起始搜索半径范围内仅检索到唯一符合要求的点,就将该点判定为最佳补光点;当前半径范围内没有找到符合条件的帕累托最优解,就采用步进式半径扩展策略,逐步扩大搜索范围,直到找到符合要求的最近邻点;同一次搜索过程中出现多个符合要求的点,就选取对应光合速率最大的点作为最佳补光点。这类渐进式搜索机制,可保证补光策略的实时性与准确性,降低计算复杂度,提升系统的响应效率。步进搜索算法流程图如图3所示。
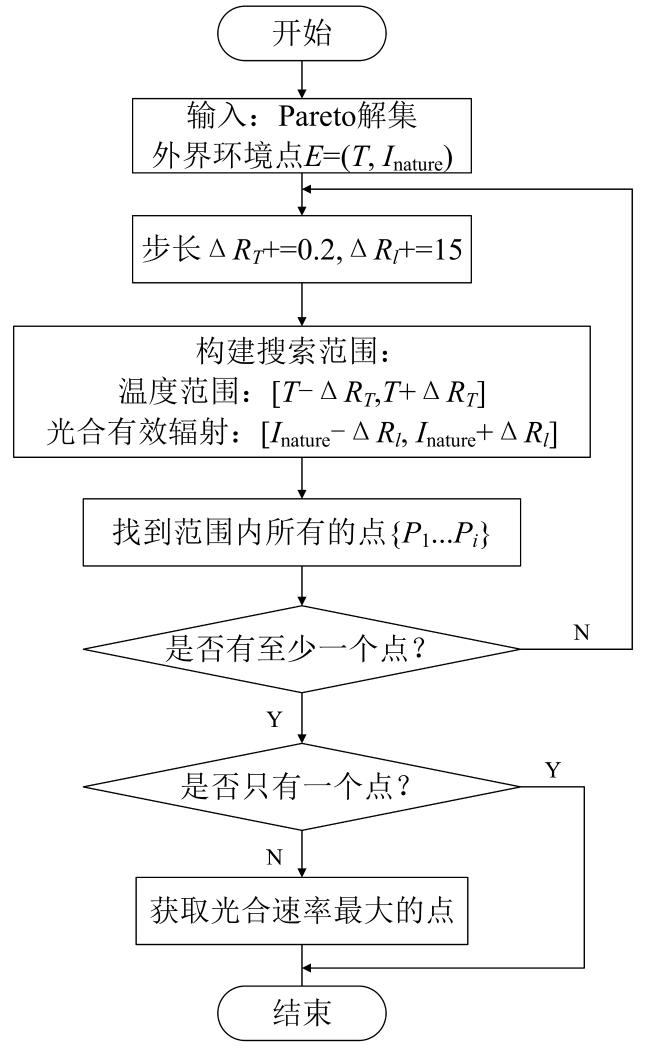
图3 光合最佳效能点步进搜索流程图

Fig. 3 Step search flowchart for optimum photosynthetic efficiency points

搜索半径R可用来划定目标点(x,y)周边的候选数据筛选范围,其中x指代环境温度,y指代自然光照强度。相关参数ΔRT 是温度维度的搜索步长,另一参数ΔRI 是光合有效辐射维度的搜索步长,还可直接作为初始搜索半径。本研究将初始搜索半径设为R=(ΔRI,ΔRT ),这么设置可在保障局部邻域搜索精度的基础上,优先筛选与目标环境条件距离最近的数据点,防止初始搜索范围过大,纳入较远环境条件对应的相关数据,降低补光强度匹配结果的准确度。当半径R覆盖范围内没有候选数据点时,算法会依照对应步长ΔRT 、ΔRI 逐步调大搜索范围,也就是将R=R+ΔR直到搜索到符合要求的数据点为止。若搜索范围内只有一个候选点,直接返回该点对应的补光强度I extra;要是有多个候选点,优先挑选光合速率最高的数据点,返回该点对应的补光强度I extra。搜索步长可结合实际应用场景、数据采样精度和使用者需求灵活调整。本研究参考实验数据的分布特征,分别设定温度维度和光合有效辐射维度的搜索步长,其中温度维度步长设为ΔRT =0.2,光合有效辐射维度步长设为ΔRI =0.5。光合最佳效能点的步进搜索流程可参考图4。
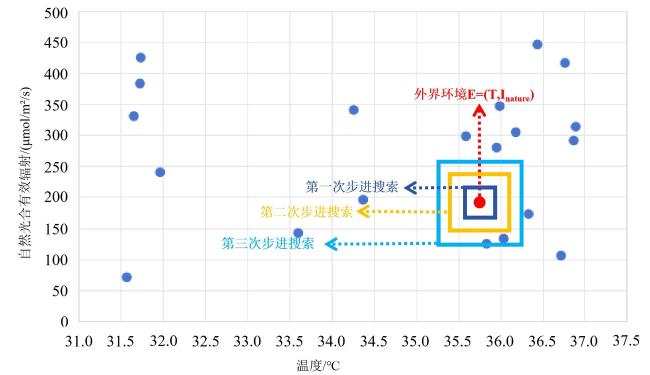
图4 设施葡萄光合最佳效能点步进搜索过程

Fig. 4 Step search for optimum photosynthetic efficiency points of protected grapes

图4里的E点显示,第一轮搜索与第二轮搜索未找到符合要求的点位后,逐步扩大搜索半径,第三轮搜索时,三个数据点落入预设的搜索半径范围内。参照帕累托前沿分析结果,系统已筛选出能耗最优数据集。将光合速率设为关键筛选指标,对这三个候选点的光合速率展开对比分析后,选定光合速率最高的数据点作为最优解(OPEP)。参照该点对应的补光灯光合有效辐射,调整实际使用的补光灯,为设施葡萄生长匹配最优的补光策略。

5 结果与讨论

5.1 光温交互模型验证分析

借助本研究构建的光照与温度相互作用模型,以阐明作物生长阶段内光照与温度对葡萄生产能力的耦合作用。将实测获取的环境温度、光合有效辐射及对应的葡萄叶片光合速率数据按8∶2的比例分为训练集与测试集,拟合得到的三维曲面在图5中展示。
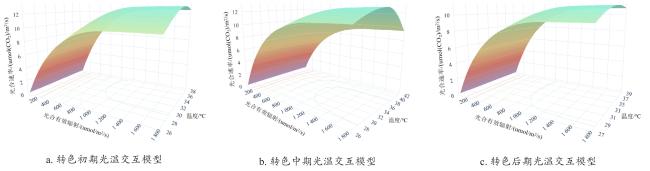
图5 设施葡萄转色期光温交互模型拟合

Fig. 5 Model fitting of light-temperature interaction for protected grapes during color transition period

结合光合有效辐射与温度对应光合速率的函数耦合研究内容,借助三维曲面图可呈现葡萄转色阶段的光合有效辐射与温度两类因子对葡萄叶片光合速率(Pn )的协同调控机制。试验整理的对应数据可看出,Pn 对应光合有效辐射与温度的变化表现出明确的非线性响应特征:在转色前期,温度偏低的条件下(32~34 ℃)Pn 对应光合有效辐射数值的升高出现快速上升的情况,温度超过35 ℃时,Pn 增长速率会有所放缓,在高温强光条件下(PAR>1 200 μmol/m2/s,T>36 ℃)会出现小幅下降的趋势;在转色中期,Pn 在36~38 ℃区间内对光合有效辐射变化的响应程度最高,温度超出39 ℃后增长速率会放缓,在高温强光条件下(PAR>1 200 μmol/m2/s,T>40℃)会出现下降的趋势;在转色后期,Pn 在33℃~38℃范围内,对应温度的升高会出现数值增大的情况。光温交互模型评估指标的参数见表3。
表3 设施葡萄光温交互模型转色期评估指标参数表

Table 3 Parameters of evaluation indexes for light-temperature interaction model of protected grapes during color transition period

转色期 MAE RMSE R 2
转色前期 0.428 2 0.529 6 0.980 3
转色中期 0.483 4 0.603 9 0.973 5
转色后期 0.295 7 0.375 6 0.984 7
光温交互模型相关性如图6所示。光温交互模型对转色前期与中期的拟合效果较好,对应的平均绝对误差(Mean Absolute Error, MAE)依次是0.428 2与0.483 4,对应的均方根误差(Root Mean Square Error, RMSE)分别是0.529 6与0.603 9,对应的决定系数(Coefficient of Determination, R 2)数值分别是0.980 3与0.973 5,可验证模型能够有效捕捉这两个阶段的生理变化。进入转色后期后,模型的预测精度进一步提升,MAE与RMSE分别降到0.295 7与0.375 6,R 2数值上升到0.984 7。模型性能出现这类提升,可能是转色后期葡萄果实代谢逐步稳定,模型在该阶段对关键变量的响应更趋一致。
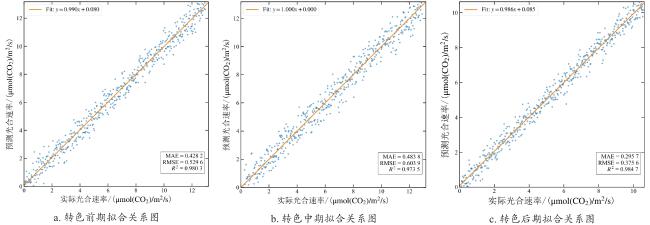
图6 设施葡萄光温交互模型评估

Fig. 6 Evaluation of light-temperature interaction model for protected grapes

5.2 光合最佳效能集策略分析

按照上文确定的变量表达式、目标函数与约束条件,用SPEA-2多目标优化算法求出帕累托最优解集,这类解集对应的帕累托前沿(Pareto Front),具体见图7。
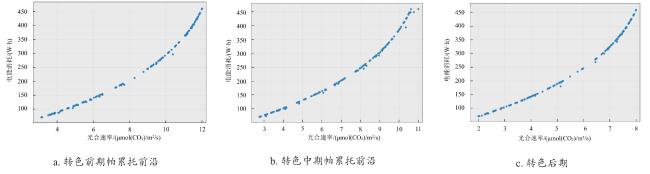
图7 不同转色期光合调控多目标优化帕累托前沿

Fig. 7 Pareto front of multi-objective optimization for photosynthetic regulation at different veraison stages

由图7得知,帕累托前沿(Pareto Front)呈现典型的非线性分布特征,光合速率与补光灯能耗之间存在明确的权衡关联。补光灯能耗持续升高时,光合速率的提升幅度会逐步收窄,最终趋向饱和。这种非线性变化特征,在实际应用中,仅调高补光强度不能无限地提升光合速率,反而可能造成能源使用效率下降。
以2025年7月转色前期阳光玫瑰葡萄的数据为例,表4列示光合最佳效能集的部分数据,覆盖不同温度、不同光合有效辐射条件下,对应匹配的光合速率和补光灯的能耗数值。
表4 设施葡萄转色前期部分光合最佳效能集

Table 4 Optimal photosynthetic performance set of protected grapes at the early color transition stage

序号 温度/℃ 自然光合有效辐射/(μmol/m2/s) 补充光合有效辐射/(μmol/m2/s) 光合速率/(μmol(CO2)/m2/s) 补光灯消耗电能/(W·h)
1 31.57 70.70 227.58 4.72 81.28
2 35.84 124.77 200.87 5.27 71.74
3 33.60 141.98 379.51 7.75 135.54
4 35.59 298.18 314.56 8.68 112.34
…… …… …… …… …… ……
67 34.26 340.38 307.49 9.02 109.82
68 31.73 383.02 240.99 8.54 86.07
69 31.74 425.01 349.59 9.75 124.85
70 36.44 446.08 811.38 12.09 289.78

5.3 能耗对比与优化分析

针对设施葡萄产业实际落地应用需求,本研究研发阳光玫瑰设施葡萄动态节能补光调控系统,该系统围绕光合最佳效能点完成核心方案设计。系统选用昆仑通态监视与控制通用系统(Monitor and Control Generated System, MCGS)组态触摸屏作为核心控制器,集成武汉中科能慧科技发展有限公司所生产的NHGH09光合有效辐射传感器,搭配邯郸市创盟电子科技有限公司出产的YM-18空气温湿光照传感器,可实时采集自然光合有效辐射和温度数据,经RS485通信方式传输至MCGS组态触摸屏,完成自然光合有效辐射、温度等环境参数的实时显示与存储。补光灯的光质选用红蓝光比例1∶4[27],设置在葡萄冠层上方约0.8 m的位置,可在葡萄上方形成均匀度较好的光场分布,能规避距离过近引发的光斑不均与热胁迫风险,也可减少距离过远造成的光强过度衰减及能量利用效率降低[28]。
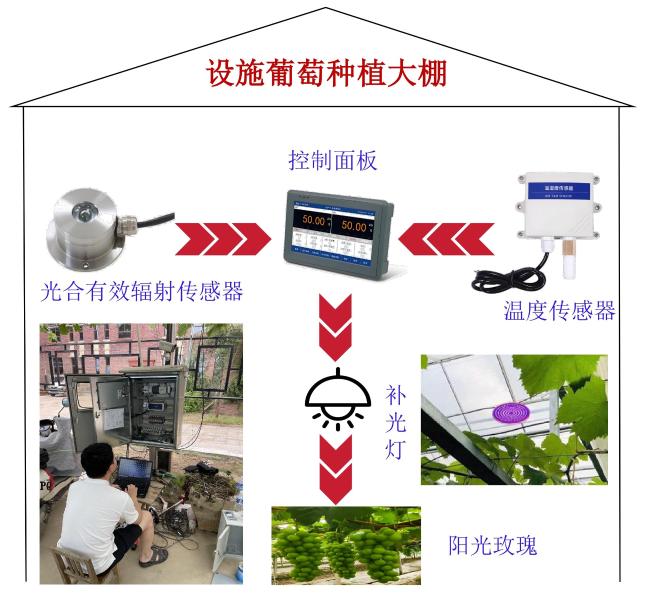
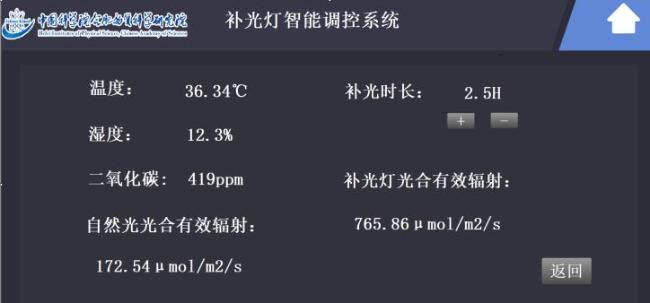
光照、温度两类传感器可为系统实时采集周边环境数据,系统参照预先设置的自动调控规则,对补光灯的光照强度开展连续动态调整。如果环境光照不够充足,或是温度偏离适宜作物生长的状态,系统会自动调高补光灯的输出强度;要是环境光照足够充裕,或是温度接近适宜生长区间,系统就会调低补光灯的输出强度。整个调节过程不会仅依照单一固定阈值开展开关式控制,会结合实时监测到的各类数据做出动态响应,既可以匹配作物的生长需求,也能提升电能的利用效率。系统的运行过程与对应控制界面,分别在图8和图9中展示。
图8 设施葡萄补光系统运行过程

Fig. 8 The operation process of the supplementary lighting system for protected grapes

图9 设施葡萄补光调控系统软件界面

Fig. 9 Software interface of supplementary light regulation system of the protected grapes

本研究把葡萄种植节能补光调控系统落地到安徽合肥国家级农业科技产业园(庐江台湾农民创业园)内的设施葡萄种植区,挑选“阳光玫瑰”葡萄转色的前、中、后三个阶段开展验证,划分为转色前期(2025年7月2日—2025年7月6日)、转色中期(2025年7月30日—2025年8月3日)和转色后期(2025年8月22日—2025年8月26日)。每个验证阶段内,每天固定在9∶00~11∶00与15∶00~17∶00开展数据采集。设施葡萄的环境温度、自然光条件下的光合有效辐射数据由葡萄光照调控系统实时采集获取,光饱和点与光合最佳效能点对应的光合速率,由光温交互模型计算得到,光饱和点与光合最佳效能点对应的电能消耗量,由公式(5)计算得到。
将采集到的数据完成平均处理后,统计每日每小时电能消耗与光合速率的变化情况,以评估模型实际运行性能与节能成效。图10展示了不同条件下光合速率与对应能耗的对比情况。
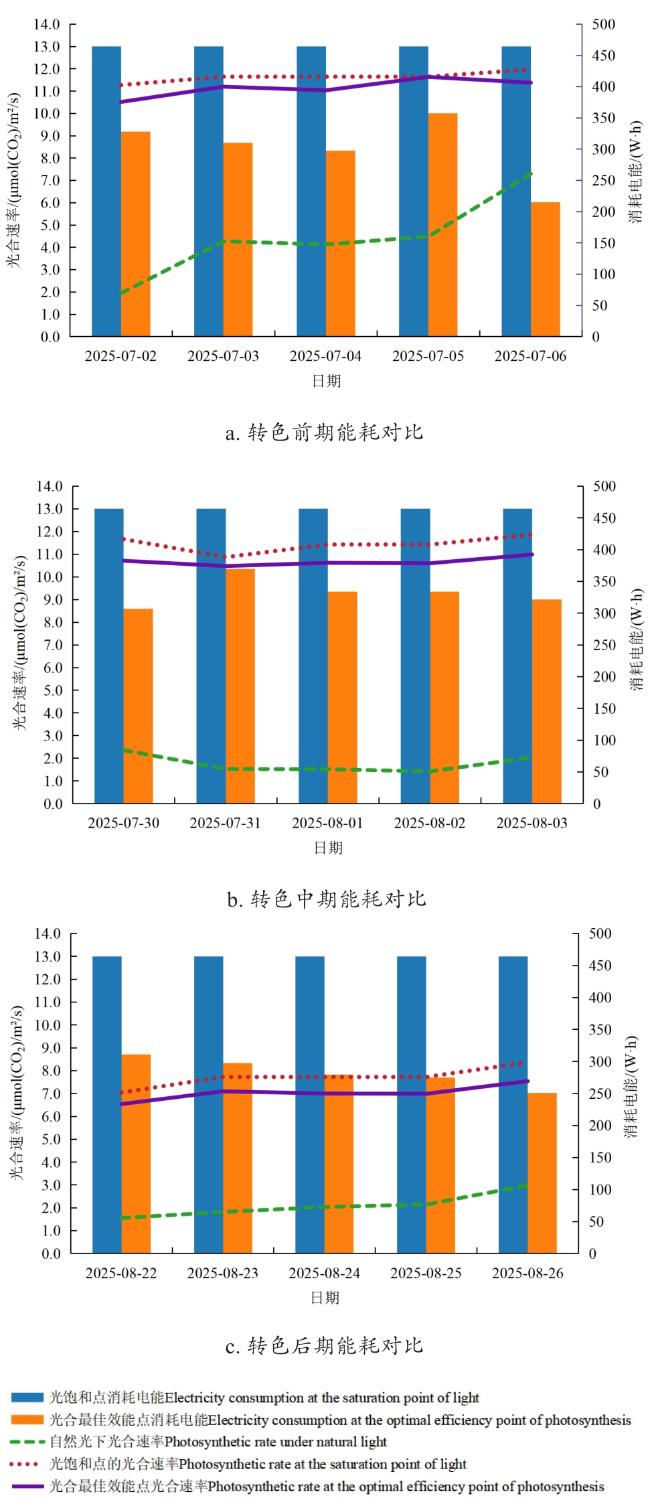
图10 设施葡萄转色期补光能耗对比

Fig. 10 Comparison of supplementary lighting energy consumption of protected grapes during color veraison

图10a是转色前期能耗对比情况,自然光合有效辐射条件下,平均每小时光合速率是4.43 μmol/m2/s,采用光饱和点补光时,平均每小时光合速率是11.64 μmol/m2/s,采用OPEP补光时,平均每小时光合速率是11.15 μmol/m2/s。光饱和点补光条件下,平均每小时电能消耗为464.29 W·h;OPEP补光条件下,平均每小时电能消耗为301.58 W·h。OPEP补光与光饱和点补光对照,光合速率虽降低4.20%,但电能消耗降低35.04%。
图10b对应转色中期试验结果,测试时段阴雨天气出现频次高,自然光合有效辐射供应不足。该环境下,自然光照对应的平均每小时光合速率为1.77 μmol/m2/s,光饱和点补光处理组,平均每小时光合速率为11.45 μmol/m2/s,用OPEP模式补光处理组,平均每小时光合速率为10.68 μmol/m2/s。光饱和点补光处理组,平均每小时电能消耗量为464.29 W·h;OPEP补光处理组,平均每小时电能消耗量为331.21 W·h。OPEP补光模式和光饱和点补光对比,光合速率虽有降低6.70%,但电能消耗量降低28.66%。
图10c对应转色后期的试验结果。本次试验开展时段温度偏高、阴天较多,自然条件下光合有效辐射达不到需求。处于自然光合有效辐射环境中,每小时光合速率的平均值为2.11 μmol/m2/s,按光饱和点参数补光时,每小时光合速率的平均值为7.72 μmol/m2/s,采用OPEP模式补光时,测算的每小时平均光合速率为7.03 μmol/m2/s。按光饱和点参数补光时,每小时平均电能消耗为464.29 W·h;采用OPEP模式补光时,每小时平均电能消耗为282.71 W·h。OPEP补光模式和光饱和点补光模式相比,光合速率虽然仅降低8.90%,但电能消耗的下降幅度达39.10%。综上所述,对比OPEP补光与光饱和点补光,OPEP补光使得设施葡萄光合速率仅小幅下降6.60%,补光能耗平均降低34.27%。
为进一步探究不同补光处理对葡萄果实生长的影响,直观呈现各处理组葡萄纵径的数据分布特点,本研究选用小提琴图,对不补光、光合最佳效能点、光饱和点三类处理下的葡萄纵径开展比较分析,如图11所示。
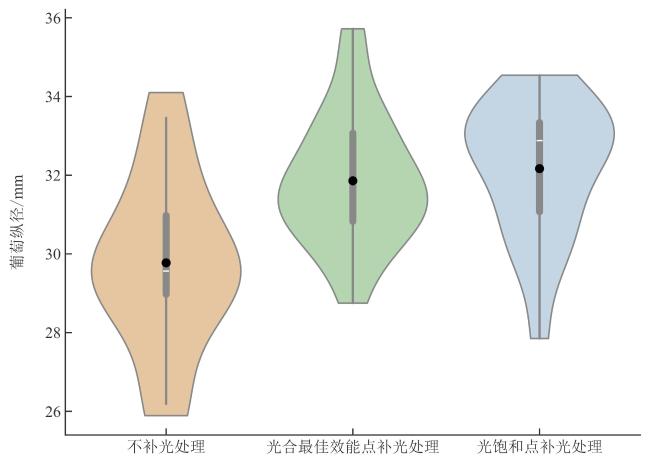
图11 不同补光处理下葡萄纵径分布的小提琴图

Fig. 11 Violin plot of grape longitudinal diameter distribution under different supplemental lighting treatments

观察图11可见,各类补光干预对葡萄纵径的作用比较突出。和未进行补光的处理相比,采用光合最佳效能点处理的葡萄纵径整体有上升表现,对应数据大多落在较高数值范围,该处理可促进果实纵向生长。光饱和点处理的葡萄纵径均值虽略高于光合最佳效能点处理,但两组数据重叠程度很高,差异较小,光照达到光合最佳效能点后,继续提升光强对葡萄纵径的促进作用会逐步减弱。同时,光合最佳效能点处理的对应数据分布更为集中,对应果实的生长一致性更好。

6 结 论

本研究针对设施葡萄补光生产时,常用的光饱和点固定值补光方法能耗偏高、电能利用效率不高的核心问题,给出以光合最佳效能点为基础的“阳光玫瑰”设施葡萄动态节能补光调控方法,核心研究结论如下。
1)在设施葡萄转色期,光合有效辐射与温度存在显著交互效应。基于直角双曲线修正模型与 D-Sigmoid 函数耦合构建的光温交互模型,可有效表征双因子共同作用下叶片光合速率的响应规律,能够为动态补光调控提供可靠的光合生理预测基础。
2)设施葡萄补光调控属于多目标优化问题。以光合速率最大化、补光能耗最小化为目标,采用SPEA-2算法求解可获得一组帕累托最优解集,解集清晰揭示了葡萄光合产出与补光能耗之间此消彼长的权衡关系,为环境动态下光照参数优选提供可行方案。
3)基于步进搜索的OPEP定位策略可实现动态环境下补光参数的实时优选。试验结果表明,将该OPEP方法应用于转色期阳光玫瑰葡萄补光调控时,相较于传统光饱和点调控方式,设施葡萄光合速率仅小幅下降6.60%,但补光能耗平均降低34.27%,节能增效效果显著。
本研究搭建的设施葡萄动态节能补光调控体系,主要针对转色期阳光玫瑰葡萄完成试验验证。不同鲜食葡萄品种的光合能力、光照与温度响应特性存在明显差异,因此本研究的优化模型并非单一适配品种,结合不同葡萄品种的生理生长特性,对模型参数进行针对性校正,即可将该补光优化方案推广应用于其他设施鲜食葡萄,为各类葡萄品种的精准、节能补光调控提供技术参考。在后续研究中,可结合田间实际生产场景,纳入空气湿度、CO₂浓度等更多环境影响因子,进一步完善多目标优化模型,提升模型的通用性与实用价值,让该调控方法在不同葡萄生长环境、栽培场景中具备更强的适用性与稳定性。
本研究不存在研究者以及与公开研究成果有关的利益冲突。

[1]
GATOU P, TSIARA X, SPITALAS A, et al. Artificial intelligence techniques in grapevine research: A comparative study with an extensive review of datasets, diseases, and techniques evaluation[J]. Sensors, 2024, 24(19): 6211.

[2]
LI H L, YUAN Y P, WU D, et al. Optimizing of architectural geometry and tubular daylight guidance system based on genetic algorithm to enhance daylighting and energy performance in underground office buildings[J]. Journal of Building Engineering, 2024, 86: 108895.

[3]
郭威, 吴华瑞, 郭旺, 等. 特色农产品设施环境下品质智能管控技术研究现状与展望[J]. 智慧农业(中英文), 2024, 6(6): 44-62.

GUO W, WU H R, GUO W, et al. Research status and prospect of quality intelligent control technology in facilities environment of characteristic agricultural products[J]. Smart Agriculture, 2024, 6(6): 44-62.

[4]
MENG Q C, QIAO J F, YANG C L. Multi-objective design of the Water distribution systems using SPEA2[C]// 2016 35th Chinese Control Conference (CCC). Piscataway, New Jersey, USA: IEEE, 2016: 2778-2783.

[5]
王剑, 赵浩森, 马越, 等. 设施蔬菜智能管控技术研究进展与展望[J]. 智慧农业(中英文), 2026, 8(1): 104-119.

WANG J, ZHAO H S, MA Y, et al. Research progress and prospects of intelligent control technology for facility vegetable[J]. Smart Agriculture, 2026, 8(1): 104-119.

[6]
葛昊明, 蒋彩麟, 蒋宁晔, 等. 面向瓜果蔬菜增产的自适应节能补光系统设计[J]. 中国新技术新产品, 2024(24): 1-5.

[7]
胡瑾, 杨永霞, 李远方, 等. 温室环境控制方法研究现状分析与展望[J]. 农业工程学报, 2024, 40(1): 112-128.

HU J, YANG Y X, LI Y F, et al. Analysis and prospect of the environmental control systems for greenhouse[J]. Transactions of the Chinese Society of Agricultural Engineering, 2024, 40(1): 112-128.

[8]
STIRBET A, LAZÁR D, GUO Y, et al. Photosynthesis: Basics, history and modelling[J]. Annals of Botany, 2020, 126(4): 511-537.

[9]
JAYASURIYA N, GUO Y, HU W, et al. Machine vision based plant height estimation for protected crop facilities[J]. Computers and Electronics in Agriculture, 2024, 218: 108669.

[10]
MOSHARAFIAN S, AFZALI S, WEAVER G M, et al. Optimal lighting control in greenhouse by incorporating sunlight prediction[J]. Computers and Electronics in Agriculture, 2021, 188: 106300.

[11]
MAEDA K, MASUDA E, TAMASHIRO T, et al. Comparison of supplemental LED top- and interlighting for year-round production of cherry tomato[J]. Agronomy, 2022, 12(8): 1878.

[12]
CHEN X Y, JIANG Z H, TAI Q L, et al. Construction of a photosynthetic rate prediction model for greenhouse strawberries with distributed regulation of light environment[J]. Mathematical Biosciences and Engineering, 2022, 19(12): 12774-12791.

[13]
GAO P, TIAN Z W, LU Y Q, et al. A decision-making model for light environment control of tomato seedlings aiming at the knee point of light-response curves[J]. Computers and Electronics in Agriculture, 2022, 198: 107103.

[14]
徐立鸿, 徐赫, 蔚瑞华. 温室蓝莓光温协调优化模型与控制策略研究[J]. 农业机械学报, 2022, 53(1): 360-369.

XU L H, XU H, WEI R H. Optimal model of blueberry greenhouse light and temperature coordination[J]. Transactions of the Chinese Society for Agricultural Machinery, 2022, 53(1): 360-369.

[15]
FU L J, CHEN J Q, TAN J L, et al. An improved SIF-based GPP estimation method based on quantifying the joint effect of photosynthetically active radiation and temperature on LUE/SIFyield[J]. Ecological Modelling, 2025, 501(C): 111017.

[16]
曹雄军, 韩佳宇, 成果, 等. 光照时数及强度对‘阳光玫瑰’葡萄产量形成的影响[J]. 园艺学报, 2023, 50(8): 1739-1746.

CAO X J, HAN J Y, CHENG G, et al. Effects of light duration and intensity on yield formation of 'shine-Muscat' grape[J]. Acta Horticulturae Sinica, 2023, 50(8): 1739-1746.

[17]
GUPTA R, SHARMA R D, RAO Y R, et al. Acclimation potential of Noni (Morinda citrifolia L.) plant to temperature stress is mediated through photosynthetic electron transport rate[J]. Plant Signaling & Behavior, 2021, 16(3): 1865687.

[18]
LIU T, YUAN Q, WANG Y. Prediction model of photosynthetic rate based on SOPSO-LSSVM for regulation of greenhouse light environment[J]. Engineering Letters, 2021, 29(1): 297-301.

[19]
ZUBAIDI A, ANUGRAHWATI D R, MCDONALD G K, et al. Yield and photosynthetic rate of wheat under continuously high temperature[J]. IOP Conference Series: Earth and Environmental Science, 2021, 648(1): 012126.

[20]
WANG Y, ZHONG Z H, QIN S, et al. Effects of temperature and light on growth rate and photosynthetic characteristics of Sargassum horneri [J]. Journal of Ocean University of China, 2021, 20(1): 101-110.

[21]
FERNÁNDEZ-GONZÁLEZ C, PÉREZ-LORENZO M, PRATT N, et al. Effects of temperature and nutrient supply on resource allocation, photosynthetic strategy, and metabolic rates of Synechococcus sp[J]. Journal of Phycology, 2020, 56(3): 818-829.

[22]
童佳丽, 俞飞, 张明如, 等. 光合有效辐射对芒萁光合、荧光和光合诱导特征的影响[J]. 东北林业大学学报, 2024, 52(11): 40-46, 55.

TONG J L, YU F, ZHANG M R, et al. The effect of photosynthetically active radiation on the photosynthetic, fluorescence, and photosynthesis-induced characteristics of Dicranopteris dichotoma[J]. Journal of Northeast Forestry University, 2024, 52(11): 40-46, 55.

[23]
GREER D H. Modelling seasonal changes in the temperature-dependency of CO2 photosynthetic responses in two Vitis vinifera cultivars[J]. Functional Plant Biology, 2018, 45(3): 315-327.

[24]
KIZILDENIZ T, PASCUAL I, IRIGOYEN J J, et al. Future CO2, warming and water deficit impact white and red Tempranillo grapevine: photosynthetic acclimation to elevated CO2 and biomass allocation[J]. Physiologia Plantarum, 2021, 172(3): 1779-1794.

[25]
史明文. 基于生菜生长模型的温室环境节能控制方法研究[D]. 杨凌: 西北农林科技大学, 2023.

SHI M W. Research on method of energy saving control for green house environment based on lettuce growth model[D]. Yangling: Northwest A&F University, 2023.

[26]
KUNERT N, HAJEK P, HIETZ P, et al. Summer temperatures reach the thermal tolerance threshold of photosynthetic decline in temperate conifers[J]. Plant Biology, 2021, 24: 1254-1261.

[27]
任婷婷, 张廷秀, 战良, 等. 不同光质补光对设施栽培'阳光玫瑰'葡萄果实品质的影响[J]. 园艺学报, 2025, 52(9): 2464-2476.

REN T T, ZHANG T X, ZHAN L, et al. Effect of different light quality on berry quality of 'shine Muscat' grape[J]. Acta Horticulturae Sinica, 2025, 52(9): 2464-2476.

[28]
YUAN Y, LIU S Q, XIE Y M, et al. The effects of light duration and intensity with supplemental light-emitting diode lights on grape photosynthesis, yield, and fruit quality[J]. Agronomy, 2025, 15(3): 518.

Outlines

/

〈 〉